Appearance
Wnt激活扰乱细胞竞争,并通过NF-κB-MMP21通路导致转化细胞的弥漫性侵袭(文献阅读7)
Title: Wnt activation disturbs cell competition and causes diffuse invasion of transformed cells through NF-κB-MMP21 pathway
Wnt激活扰乱细胞竞争,并通过NF-κB-MMP21通路导致转化细胞的弥漫性侵袭
速览
知识点
- RasV12转化细胞:带有Ras基因V12位点突变的细胞,这种突变使Ras蛋白持续活化,推动细胞走向致癌转化
- 细胞竞争(cell competition):在健康组织中,正常的上皮细胞具有“竞争优势”,以此淘汰邻近的异常细胞
- Wnt 信号通路:是一套由 Wnt 蛋白配体触发、通过 Frizzled/LRP 受体、β-catenin(或其他分支通路) 级联传递,最终调控 基因转录、细胞极性与迁移 的高度保守信号网络。在胚胎发育、成体干细胞稳态和多种疾病(尤其是癌症)中都扮演关键角色。
- non-cell autonomous非细胞自主性:意味着变化并非源自细胞自身内部的改变,而是由周围环境或邻近细胞的影响所致
研究动机
正常上皮细胞会利用自身的竞争优势,将携带RasV12致癌突变的转化细胞从上皮顶端挤出并清除到管腔内部。然而,目前尚不清楚存在哪些内部或外部因素会削弱这种细胞竞争,从而促发癌变
思路
模拟肿瘤发生过程中的多重连续基因突变,考察这些累积突变对小肠上皮组织中RasV12诱导的细胞竞争的影响
- 在小肠上皮中引入RasV12突变来触发细胞竞争,然后再加入另一个其他的突变(如Wnt通路相关突变),观察突变的累积对原本正常进行的RasV12细胞竞争有何影响。小肠上皮被用作模型组织,RasV12是诱导细胞竞争的触发因素,而加入其它基因变化模拟肿瘤演进过程中多步突变的累积。
主要发现
当Wnt通路被激活时,RasV12细胞从上皮中挤出的方向发生了逆转;这些转化细胞并非被向顶端挤出,而是通过非细胞自主性的MMP21(一种蛋白酶)上调,从基底部脱离上皮层。
MMP21水平的升高部分是通过NF-κB信号通路触发的,抑制NF-κB可使RasV12细胞恢复向顶端清除的命运
在人类早期结直肠癌中,NF-κB-MMP21通路显著增强
高突变负荷的细胞可以通过表现为“失适者”(不利细胞)的行为来利用细胞竞争机制,从而获得侵袭优势
实验部分
前提研究
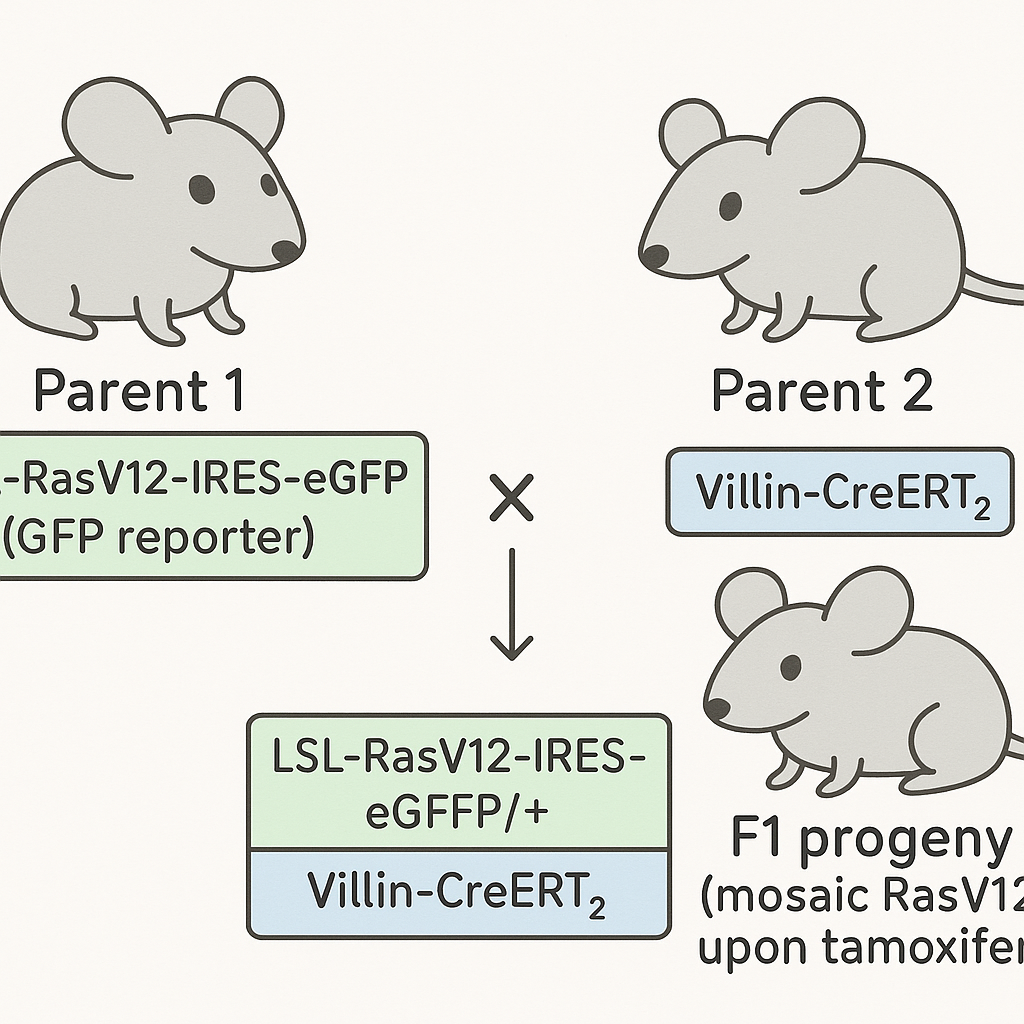
在之前的一项研究中,我们通过让LSL-RasV12-IRES-eGFP小鼠与Cre-ERT2转基因系杂交,建立了一个细胞竞争小鼠模型。
课题组已经开发了一个特定的小鼠模型来研究细胞竞争。这个模型的构建方法是利用了转基因技术:将一种携带LSL-RasV12-IRES-eGFP的等位基因引入小鼠,再与表达Cre-ERT2的转基因小鼠交配,从而获得后代同时携带这两种元件。
LSL-RasV12-IRES-eGFP:LSL代表LoxP-Stop-LoxP元件,即在RasV12基因前有一个被LoxP位点包夹的“终止片段”。这种设计允许RasV12基因仅在存在Cre重组酶时才被激活表达。IRES-eGFP表示在RasV12后接有GFP报告基因,以便追踪这些细胞。简而言之,这只小鼠携带一个沉默的RasV12致癌基因(连接绿色荧光蛋白作为标记)。
Cre-ERT2:这是一种诱导型的Cre重组酶系统。Cre是一种可以识别LoxP序列并切除其间片段的酶;ERT2是与Cre融合的雌激素受体突变体,只有在结合他莫昔芬(Tamoxifen)时Cre才进入细胞核发挥作用。Cre-ERT2转基因小鼠在全身(常由启动子如Villin驱动)表达这种Cre酶,但Cre默认是失活的,只有给小鼠注射他莫昔芬后Cre才被激活。
将这两种小鼠杂交,就得到后代:其细胞中既有沉默的RasV12致癌基因,又有可诱导的Cre酶。这样,通过给小鼠低剂量注射他莫昔芬,就可以在局部、少量细胞中激活RasV12和GFP,使这些细胞成为RasV12转化细胞且带绿色荧光标记。这种激活是镶嵌式的,也就是在上皮组织内散布少量突变细胞,模拟体内肿瘤发生初期少数细胞突变的情况。
正式实验
思路
(验证)证实RasV12转化细胞在正常细胞包围下会通过细胞竞争被顶向上皮表面挤出
(探索)一个细胞积累了多个致癌突变后,它周围正常细胞与其之间的竞争关系会发生什么变化?
利用**人类家族性腺瘤性息肉病(FAP)**作为模型,在多阶段致癌过程中评估细胞竞争功能的扰动
由于APC肿瘤抑制基因突变是结直肠癌中最常见的起始突变, 我们构建了一个细胞竞争小鼠模型,使APC突变的上皮内以低频率产生Ras活化,从而模拟FAP,并考察转化细胞的命运。
在细胞竞争模型中,通过低剂量他莫昔芬处理,可在上皮层内马赛克式地产生RasV12转化细胞,通过这一模型,可以证实RasV12转化细胞在正常细胞包围下会通过细胞竞争被顶向上皮表面挤出
在细胞竞争模型基础上,再加入APC基因的突变/缺失。然后通过低剂量他莫昔芬低频率地产生Ras激活细胞。如此一来,这些Ras突变细胞生长在APC缺失、Wnt高信号的环境中(类似FAP病人的肠道情况)。研究者随后跟踪这些细胞的命运:它们是否还能像以前在正常背景中那样被顶出,或者会有不同结果。
结果解读
Wnt异常激活扰乱顶端挤出,增强RasV12转化细胞非细胞自主性的基底浸润
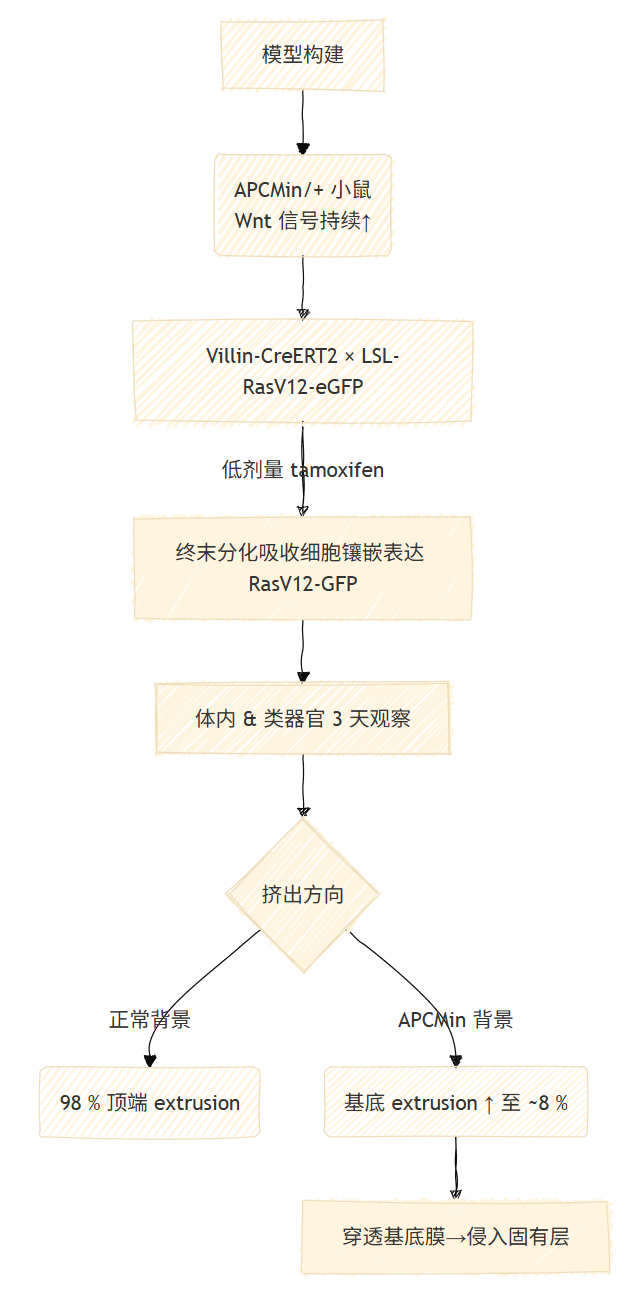
- 目标:在APC缺陷(Wnt激活)的背景下,引入少量RasV12突变细胞。
- 方法:将三种不同基因修饰的小鼠交配:
- APC^Min小鼠:提供APC杂合突变背景(Wnt↑)。
- Villin-CreERT2小鼠:提供肠道上皮特异且可诱导的Cre重组酶。Villin基因启动子驱动CreERT2主要在肠道上皮细胞表达。ERT2使Cre在有他莫昔芬时活化。
- DNMT1-CAG-LSL-HRas^V12-IRES-eGFP小鼠:这个转基因小鼠带有人造的RasV12等位基因(连接GFP)沉默插入。DNMT1-CAG代表在DNA甲基转移酶1基因位点插入了CAG启动子驱动的LoxP-STOP-LoxP-H-Ras^V12-IRES-eGFP片段。简单来说,这只小鼠在全身细胞都有一个隐蔽的RasV12-GFP基因,等候Cre激活。
- 将上述三种基因整合到一只小鼠上,就是APC^Min-Villin-RasV12复合品系:它同时具有APC^Min突变、CreERT2以及沉默的RasV12-GFP。类似地,还产生了一个APC^Min-Villin-GFP对照组,它没有RasV12突变(只携带可诱导的GFP基因)。这样,当研究者给这两组小鼠低剂量他莫昔芬时:
- APC^Min-Villin-RasV12组会在小肠上镶嵌地产生RasV12 + GFP的转化细胞;
- APC^Min-Villin-GFP组只产生GFP阳性的正常细胞(无Ras突变),作为对照。 通过这种杂交,作者创造了在APC基因缺失背景下比较有无RasV12突变两种情况下细胞竞争结果的模型。
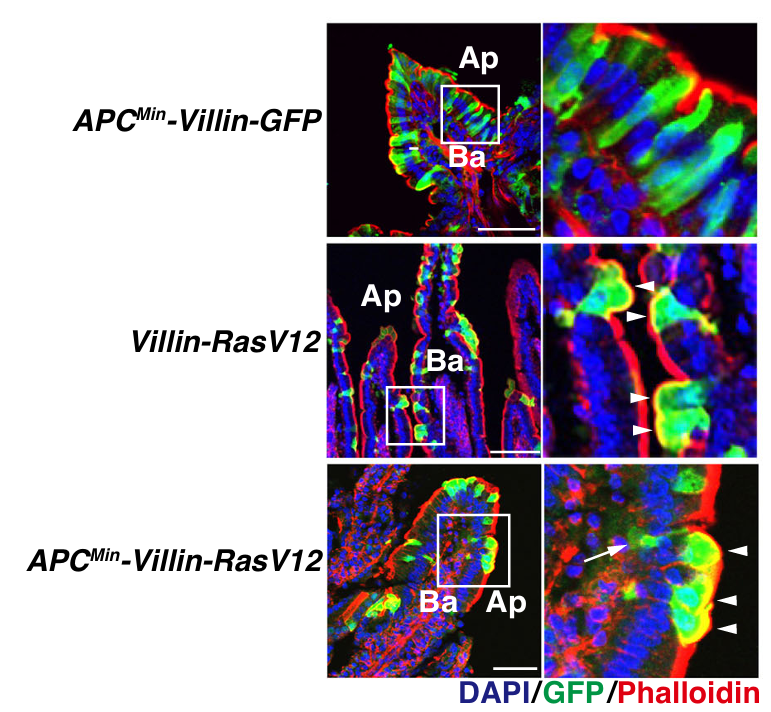
注释:Ap 指腔面,Ba 指基底膜;
① APC^Min-Villin-GFP(Wnt↑ + GFP 对照) ② Villin-RasV12(Wnt 正常 + RasV12) ③ APC^Min-Villin-RasV12(Wnt↑ + RasV12)
通过该图就能很明显的看出(Wnt 正常 + RasV12)组中,所有绿细胞核朝上(空心箭头头),说明 正常竞争 → 顶端排出;而(Wnt↑ + RasV12)组中,Wnt↑ 时方向反转;细胞已钻到基底膜外侧。
APCMin-Villin-RasV12小鼠发生侵袭性癌症
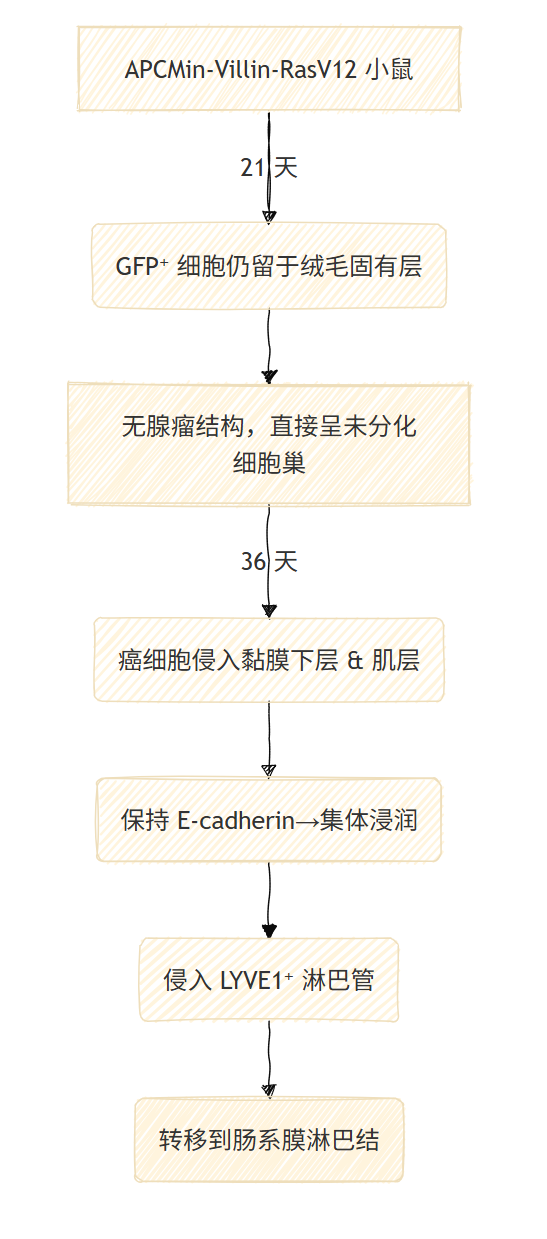
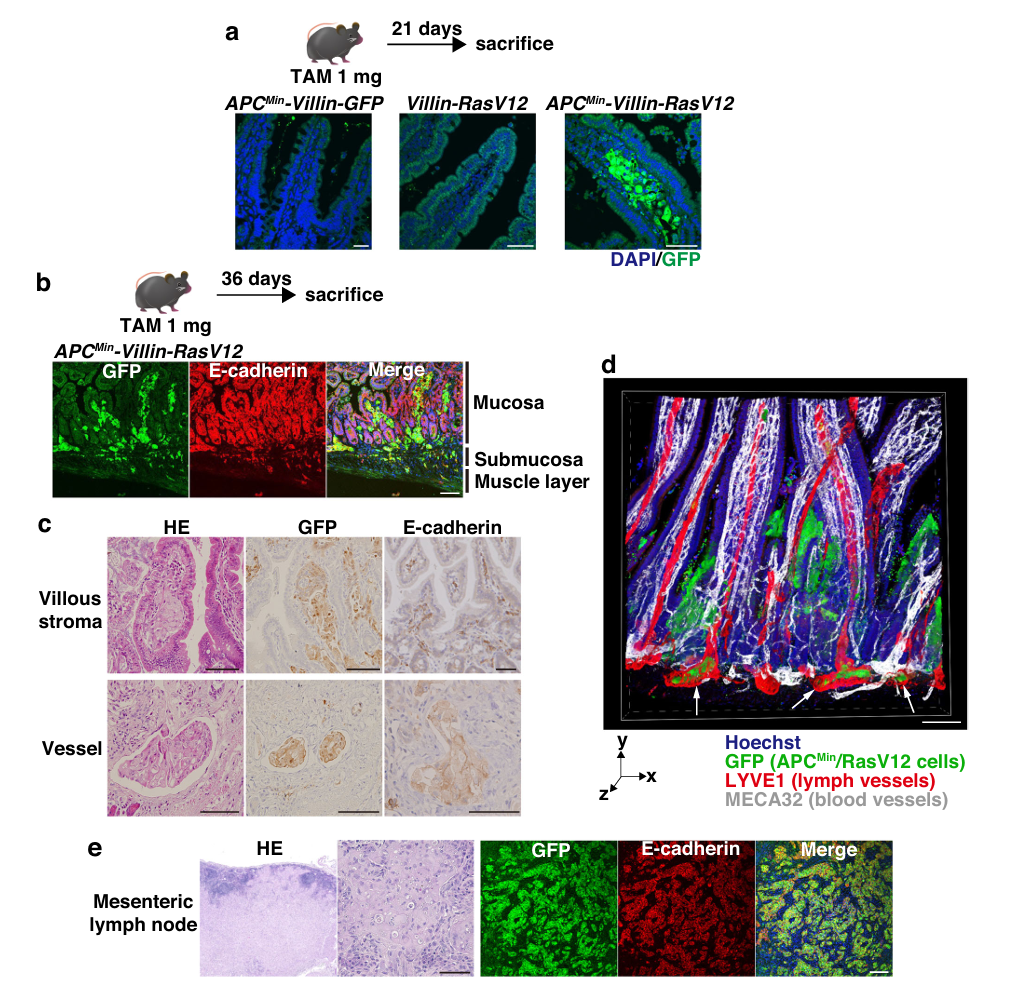
- F2b可见绿色细胞群已穿过黏膜下层至肌层,说明已发生侵袭
- F2d全厚度 3D,红色示淋巴管,可见APCMin-Villin-RasV12细胞(绿色)经由淋巴管入侵
MMP21调控APCMin/RasV12细胞的非细胞自主性基底挤出
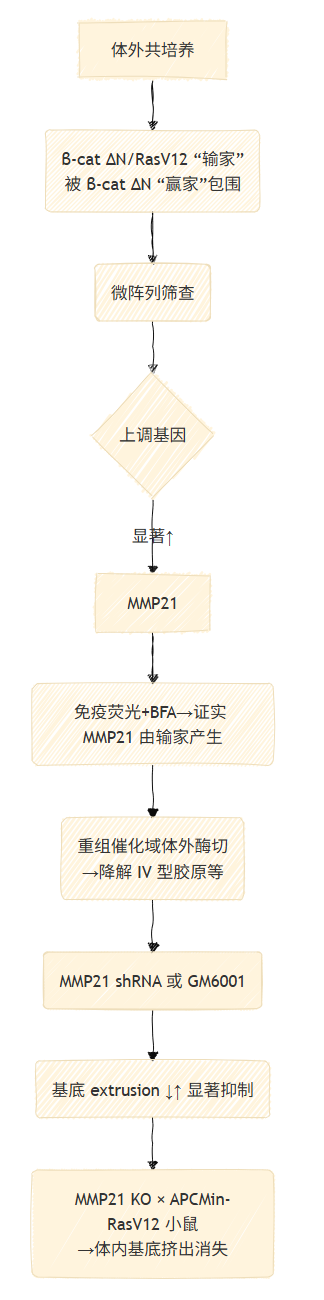
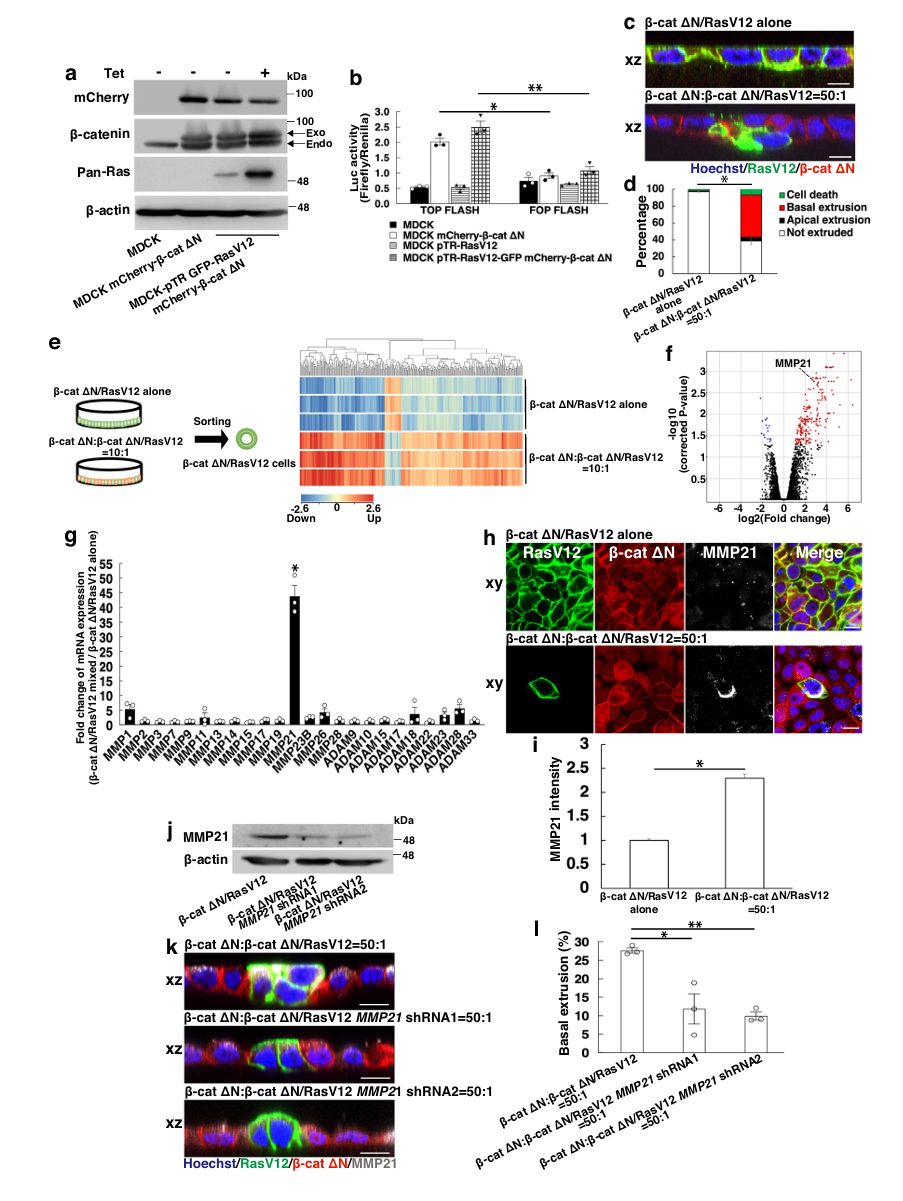
F3a:Western——确认两种细胞系表达目标蛋白从而说明模型构建成功
F3c:共培养免疫荧光——xz 面示 β-catΔN/RasV12 细胞向下钻入胶原——说明体外也可再现基底挤出
F3e-f:微阵列热图 + 火山图——MMP21 位于最显著上调基因之列
F3h:BFA 阻断分泌后免疫荧光——说明MMP21上调位置位于输家细胞内
NF-κB信号直接提升MMP21的表达
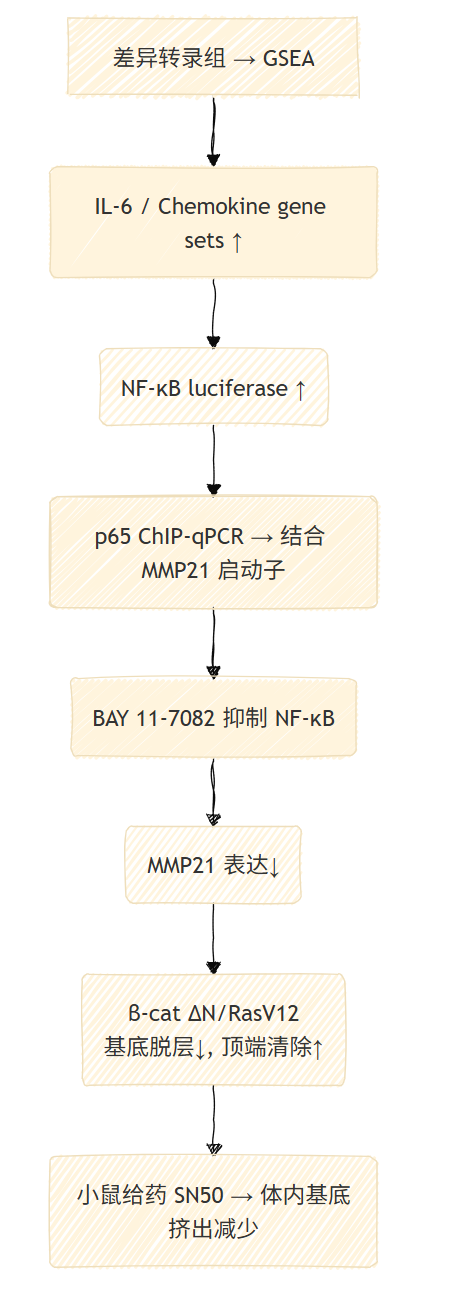
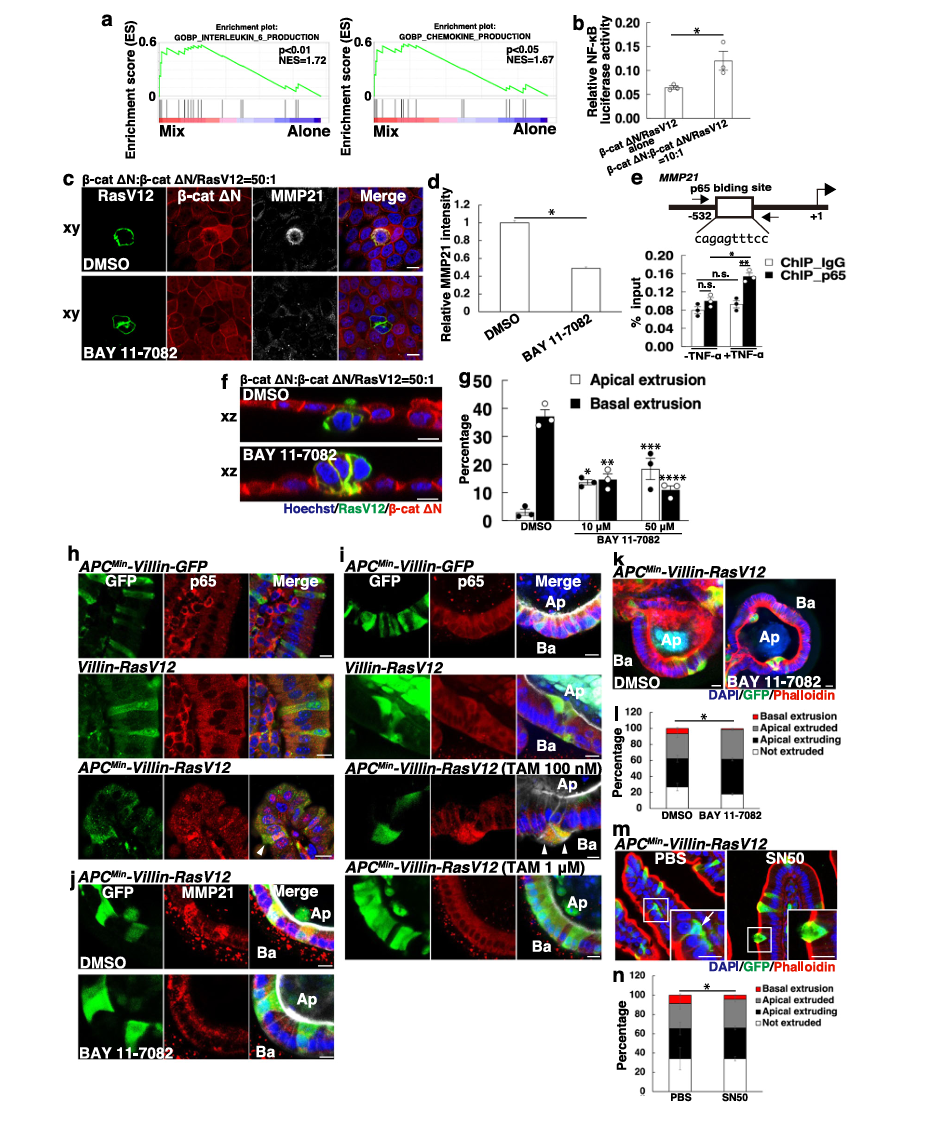
- 这个地方的结论比较晦涩难懂,如果全部阐述的话有点冗长,总之就是通过转录组➜报告➜ChIP➜药理干预全链路证明 NF-κB→MMP21 轴是“把细胞从顶端挤出改成基底脱层”的核心开关
NF-κB-MMP21通路在人体早期结直肠癌中被激活
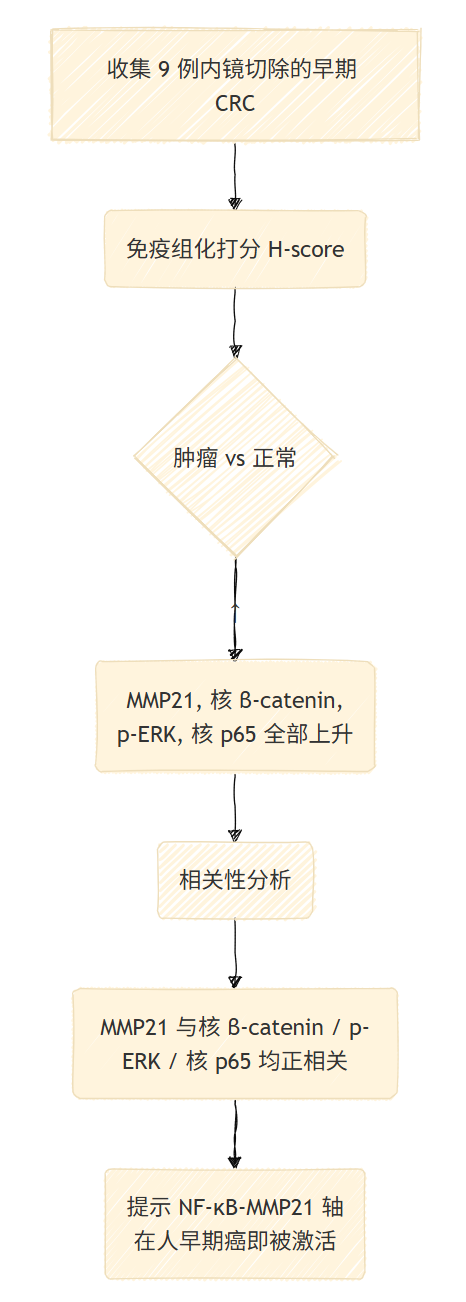
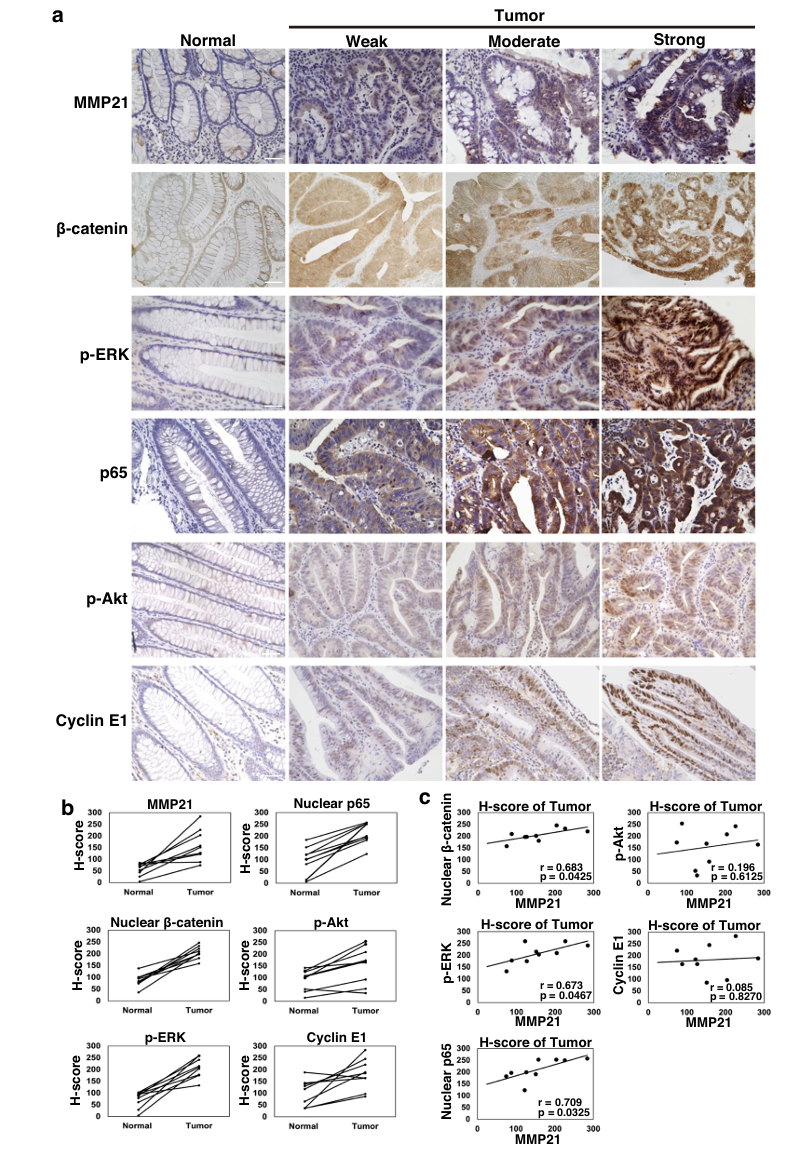
- F6a:IHC 强度示例图——弱/中/强等级对应 H-score 打分
把 NF-κB-MMP21 轴从小鼠外推到真实患者早期癌,为其 临床相关性与药靶价值 提供证据。
讨论部分
| 主题 | 要点 | 意义 |
|---|---|---|
| 细胞竞争可被“反向劫持” | 在正常组织里,细胞竞争把 RasV12 细胞顶端挤出并清除;一旦 Wnt / APC 失活 先发生,竞争机制被扭曲,转化细胞反而被向基底驱赶并开始浸润。 | 揭示了先天抗癌屏障在特定突变序列下会转为促癌动力。 |
| NF-κB-MMP21 通路决定挤出方向 | 周围 Wnt(high) 细胞激活 RIG-I / TLR3→NF-κB,后者直接上调 MMP21;NF-κB 像“方向开关”,活化时促基底脱层,抑制时恢复顶端清除。MMP21 降解 IV 型胶原,是基底侵袭的执行因子之一。 | 指出 NF-κB-MMP21 是“防御→促进”转变的核心分子链。 |
| 细胞起源决定癌型 | 这里的恶性细胞来自终末分化的吸收细胞而非干细胞,因此跳过经典“腺瘤-腺癌”序列,直接形成 弥漫型、E-cadherin(+) 高侵袭癌。 | 提示分化细胞也可在罕见情形下成为癌源,导致与传统腺癌完全不同的病理学。 |
| 临床一致性 | 在 9 例早期人类结直肠癌中,MMP21↑、核 p65↑、核 β-catenin↑、p-ERK↑ 且 MMP21 与上述信号正相关,证实 NF-κB-MMP21 轴 在早期人癌已有增强。 | 佐证小鼠机制具临床相关性,MMP21 可作为早期浸润警示及潜在药靶。 |
| 对肿瘤进化的启示 | 结果暗示:细胞竞争本身可能“筛选”突变出现的顺序;当先出现的突变足以扭曲竞争(如 APC 失活),后续突变(如 RasV12)便能逃过正常淘汰并获得侵袭优势。 | 为解释多步致癌的突变时序、设计“重新校正”竞争的抗癌策略提供新思路。 |
写在后面
本篇文章来自京都大学分子肿瘤学的研究团队,名叫“Yasu Lab”,得名于藤田恭之教授Yasuyuki FUJITA
我好奇去探索了一下团队构成,发现其团队的外国人比例极高,其中大多是中韩。课题组的页面也很有意思,氛围感很好,如果有可能的话,我会把这一实验室列入申请候选之一。
不仅如此,课题组长期深耕于细胞转化与细胞竞争的研究领域,近年来发表的文章都是细胞竞争相关,虽然研究面不广但是研究深度很深。
这也是我第一次接触湿实验类型的文献,所以解读的过程比较长,因为想尽可能弄明白实验流程和原理,方便以后阅读更多这类文献,所以这篇文章也算作一个启蒙吧。
实验流程是很严谨的,所探究的领域也是很专精的,实验结果也是很有价值的。
做有意义的事情,感觉是一件很快乐的事情。